
La moniliasis (Moniliophthora roreri)
- Autor/a de la tecnología
- Yeirme Jaimes Suárez, Fabio Aranzazu Hernández
- Institución que la publica
- Corpoica, Fedecacao, IICA · Colombia
- Documento fuente
- MANEJO DE LAS ENFERMEDADES DEL CACAO (Theobroma cacao L) EN COLOMBIA, CON ÉNFASIS EN MONILIA (Moniliophthora roreri) · 42-43-44-45-46-47-48-49-50-51 pág.
- Código de ficha
- 900258
Descripción de la tecnología:
La moniliasis, causada por Moniliophthora roreri, es una enfermedad fúngica severa que hasta ahora se encuentra en 11 países de América Latina. El daño causado por esta enfermedad varía desde 25% hasta la pérdida total de la producción.
Origen de la enfermedad
Durante años, Ecuador fue considerado como el centro de origen de la enfermedad, debido a que en 1917 se realizó el primer reporte oficial del patógeno, cuando el fitopatólogo J. B. Rorer llegó de Trinidad a Ecuador para identificar el agente causal de la reducción de la producción de cacao. Las muestras recolectadas por Rorer fueron enviadas a R. E. Smith en la Universidad de California, allí se identificó el hongo como Monilia sp.
Phillips–Mora (2003) señaló que la moniliasis del cacao pudo aparecer por primera vez en Colombia en el departamento de Norte de Santander en 1817 y en 1851 en el departamento de Antioquia. Además, Phillips–Mora y Wilkinson (2007) encontraron reportes de la enfermedad en 1832, 1850 y 1956 para Norte de Santander y en 1881, 1916 y 1949 para Antioquia.
Según resultados de estudios moleculares, mediante el polimorfismo de la longitud de fragmentos amplificados (AFLP), perfiles ISSR y
datos de secuencias ITS, indican que existe gran diversidad genética de M. roreri en Colombia; también evidencian que es allí donde se pudo originar la enfermedad, en vez de Ecuador (Phillips-Mora et al., 2007; Phillips y Wilkinson, 2007).
Phillips-Mora et al. (2007) encontraron que existen cinco grupos genéticos de M. roreri (figura 14), de los cuales en Colombia se encuentran los grupos Co-East y Co-Central, localizados en la región del Magdalena Medio (figura 1) como los de mayor variabilidad genética y endémicos en la región.
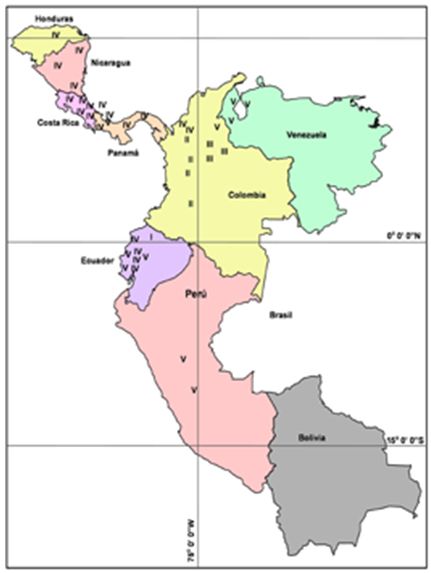
Distribución geográfica Las elevadas pérdidas por la enfermedad fueron reportadas en el suroccidente de Ecuador en 1909
(Evans, 1981). Sin embargo, existen reportes de 1817 en Colombia, sobre la aparición de la enfermedad en el oriente y centro del país (Anónimo, 1832; Ancízar, 1956; Arenas, 1993; citados por Phillips et al., 2007).
Van Hall visitó Ecuador en 1914, durante los años de bonanza del cacao y describió los síntomas que presentaban varias mazorcas enfermas. Los dos tipos de síntomas fueron denominados con nombres locales: “mancha”, lesión con pudrición de toda la
mazorca probablemente causada por un hongo y “helada”, crecimiento anormal de las mazorcas y los granos.
En la actualidad, la enfermedad afecta la mayor parte de las áreas productoras de
cacao en Colombia y Ecuador.
En Venezuela, la enfermedad se reportó oficialmente por primera vez en la región del río Catatumbo, estado Zulia en 1941 (Muller, 1941; Phillips y Wilkinson, 2007) y sigue restringida a esta región del occidente de Venezuela, separada geográficamente de las principales áreas productoras del oriente y Barlovento. Mc Laughlin (1950) reportó la enfermedad en los departamentos de Cajamarca, Huanuco y Cuzco de Perú; este reporte fue controversial hasta cuando Hernández et al. (1990) reportaron la presencia del hongo en el departamento del Amazonas (Perú). Para 1999, cerca del total de plantaciones de cacao en el Perú, estaban afectadas por M. roreri (Phillips-Mora y Wilkinson, 2007). En 1956, la presencia de M. roreri en Panamá marcó una expansión significativa del hongo a través de Mesoamérica (Orellana, 1956; Phillips-Mora y Wilkinson, 2007) (figura 2). De hecho, durante los últimos 50 años, M. roreri se ha dispersado a lo largo de 2.500 km por las principales áreas productoras de cacao de esta región: en Costa Rica se detectó en 1978 (Enríquez y Suárez, 1978), Nicaragua en 1980 (López y Enríquez, 1980), Honduras en 1997 (Porras y Enríquez, 1998), Guatemala en 2002 (Phillips-Mora y Wilkinson, 2007), Belice en 2004 (Phillips et al., 2006a) y México en el 2005 (Phillips-Mora et al., 2006b). Con este último reporte, M. roreri alcanzó el límite norte de las zonas productoras en el continente de América (Phillips-Mora y Wilkinson, 2007).
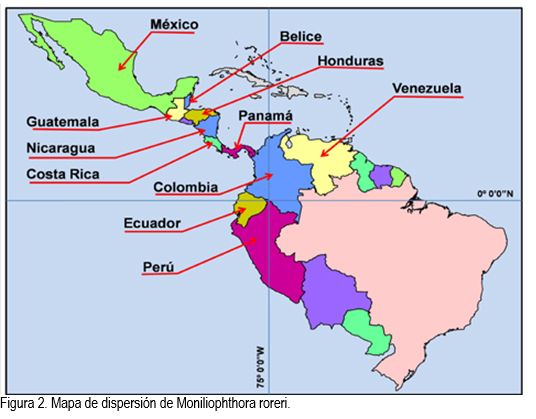
Teniendo en cuenta la gran susceptibilidad de la mayoría de los genotipos comerciales de cacao, la agresividad de este patógeno, su excepcional capacidad para sobrevivir en diferentes condiciones ambientales y su rápida dispersión natural y mediada por el hombre, se concluye que M. roreri representa una gran amenaza para los agricultores de cacao del mundo. Las pocas barreras naturales entre las áreas con presencia de la enfermedad y las que aún no existe, se consideran como la única forma de prevenir la dispersión de la moniliasis, especialmente a Brasil y Bolivia (Evans, 1986; Phillips-Mora y Wilkinson, 2007).
Etiología
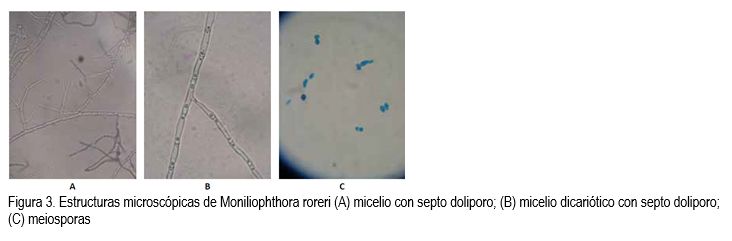
Se sabe que el centro de origen de este patógeno está en la región nororiental de Colombia, capaz de afectar especies de los géneros Herrania y Theobroma. El agente causal de la moniliasis fue inicialmente llamado Monilia roreri por Ciferri, y Parodi (1933) y clasificado dentro del filum Ascomicota, describiéndolo como un hongo anamórfico debido a la aparente ausencia de un estado meiótico o de estructuras sexuales y sus similitudes morfológicas con otros fitopatógenos del género (Evans et al., 2003). Sin embargo, Evans et al. (1978), mediante estudios de microscopia electrónica, encontraron la presencia de septo doliporo (característico de hongos homobasidiomicetos) (figura 16 A y B) y un evento único de esporogénesis basipetal, resultado que motivó la creación del nuevo género Moniliophthora (Evans et al., 2003; Griffith et al., 2003).
Taxonomía
Moniliophthora roreri es un organismo del dominio Eukaryota, reino Fungi, filum Basidiomycota, clase Basidiomycetes, subclase Agaricomycetidae, orden Agaricales, familia Tricholomataceae, género Moniliophthora y especie M. roreri.
Morfología
Evans et al. (2002) encontraron evidencias que la meiosis ocurre en las esporas de M. roreri, fenómeno consistente con su contenido nuclear variable. De ahí que es incorrecto referirse a estas estructuras como conidios (por definición estos provienen del proceso de mitosis). Parece que esto se debe a que el antepasado de M. roreri perdió la habilidad de formar un basidiocarpo, pero no la habilidad de llevar a cabo la división nuclear meiótica (Evans et al., 2003). Lo anterior sugiere que los propágulos de monilia se deben llamar esporas y no conidios.
Las esporas provienen de un basidio modificado, con un seudoestroma denso y carnoso sobre el cual el hongo produce los vestigios del pileo. Las esporas son multifuncionales, sirven no sólo para el intercambio genético, sino también para la dispersión, la infección y la supervivencia (Evans, 2007). Éstas pueden ser esféricas u ovaladas (Figura 3 C) y tienen dos formas de germinación a través del poro
germinativo o directamente a través de su pared (Urquillas, 2004).
Las esporas viejas desarrollan paredes gruesas y se tornan oscuras, las cuales pueden marcar el inicio de la fase de dormancia (Evans, 2007). El tubo germinativo presenta en el extremo distal una estructura similar a un apresorio y la hifa infectiva. Éste es único y en raras ocasiones doble (Urquillas, 2004).
Ciclo de vida del patógeno
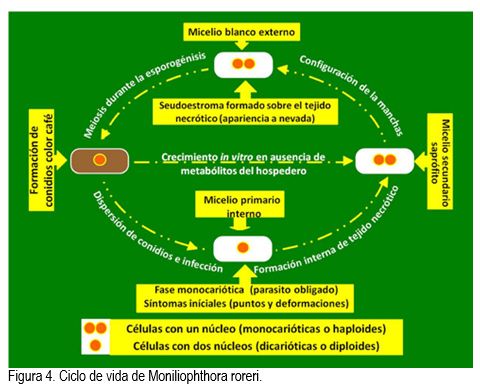
Las condiciones climáticas y la cantidad de esporas libres son factores determinantes en el ciclo de vida de M. roreri. El ciclo comienza con la estación seca, época en la que se encuentran la mayor cantidad de esporas disponibles en el ambiente (figura 4). Sin embargo, para que inicie la infección es necesario que existan condiciones de
humedad.
En Colombia, se presentan condiciones favorables para la infección y desarrollo de la monilia durante todo el año, debido a la distribución de las lluvias. Por tal motivo, es importante considerar el periodo entre cultivos, es decir, el periodo entre la cosecha y la próxima floración.
En Ecuador, el factor crítico en el ciclo de la enfermedad es la marcada estación seca y su importancia para determinar cómo M. roreri sobrevive entre cosechas y la disponibilidad de fuentes de inóculo al inicio de la estación húmeda (Evans, 1981).
En investigaciones adelantadas por el ICA entre 1960 y 1980 sobre etiología, epidemiología y control de la moniliasis, se resalta que los conidios sólo germinan en presencia de una película de agua, con mayor germinación cerca de los 24° C. En condiciones de laboratorio, las esporas que provienen de micelio esporulante, conservan la viabilidad y poder infectivo hasta 22 meses después de iniciar la
mantienen la viabilidad superior al 50%, después de 10 meses (Merchán, 1981). También se encontró que en condiciones de laboratorio la germinación de las esporas ocurre aproximadamente entre 6 y 8 h. La hifa infectiva del hongo penetra la epidermis del
fruto, desde la cual se propaga inter e intracelularmente a los tejidos subepidermales y el exocarpo (figura 4). La infección continúa a los tejidos centrales, incluyendo las semillas, e inicia el desarrollo de la necrosis desde la parte interna hacia la epidermis.
Externamente, la infección aparece como puntos aceitosos muy pequeños y circulares (figura 5 B y D), los cuales se convierten en lesiones (manchas) irregulares de color amarrillo y marrón (figura 5 C y E). El proceso desde la infección a la aparición de mancha tiene una duración aproximada de 60±10 días, dependiendo de la susceptibilidad del clon de cacao (figura 4). Entre 3 y 4 días, se desarrolla el micelio blanco sobre las lesiones y luego aparecen las esporas, las cuales confieren un color crema a marrón (figura 5 F).
En las condiciones de Santander, el ciclo de vida de M. roreri dura 60±5 días sobre clones susceptibles y, 73±8 días sobre clones con resistencia parcial (figura 4). En Colombia (Granja Luker a 1.050 msnm), se demostró con la primera aproximación al ciclo de la enfermedad y evolución de síntomas y signos (figuras 5 y 7), que los primeros síntomas aparecen en promedio a los 22 días, después de la inoculación del patógeno, y 73 días para la esporulación (Merchán, 1981).
Sintomatología
En condiciones de campo, la enfermedad se ha encontrado sólo sobre frutos. Artificialmente se han logrado infecciones sobre plántulas y primeros estadios foliares (Evans, 2007). La penetración e infección puede ocurrir en cualquier fase de desarrollo del fruto, pero son más susceptibles durante los primeros estados. La susceptibilidad de los frutos es inversamente proporcional a su edad, es decir que a mayor edad menor susceptibilidad.
Después de penetrar el fruto, el hongo se desarrolla intercelularmente en las células del parénquima cortical, presentándose normalmente un largo periodo de incubación. Los síntomas de monilia varían con la edad del fruto y con la severidad del ataque del patógeno (Merchán, 1981). Sobre frutos jóvenes se observan áreas de crecimiento anormal, formándose protuberancias pronunciadas sobre la superficie de los frutos (gibas) (figura 5 A). Los síntomas externos pueden estar completamente ausentes hasta la formación de lesiones entre 45 y 90 días después de la penetración del hongo (figura 5 B y E). Según Evans et al. (1978) esta fase se podría considerar como la fase biotrófica del hongo, en cuanto a que la necrótica puede ser precedida por la maduración irregular o prematura, la aparición de lesiones irregulares de color chocolate o castaño oscuro, que van creciendo gradualmente hasta cubrir con rapidez toda la superficie del fruto (figura 5 C, E y F).
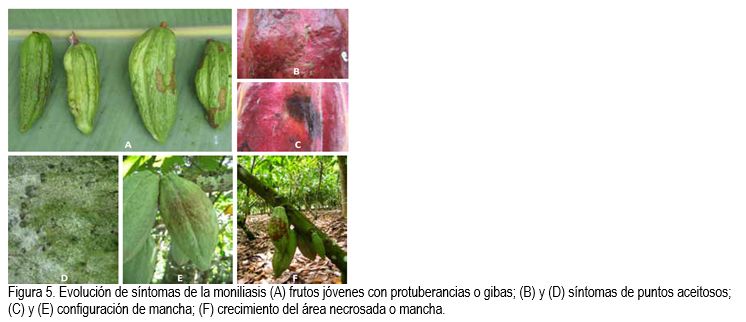
En infecciones tardías, predominan las lesiones deprimidas de color castaño oscuro (figura 6). Después del inicio de la lesión, alrededor de los 3 a 7 días, se desarrolla un micelio blanco y crema sobre los frutos infectados, tornándose luego en una densa masa pulverulenta constituida por esporas del hongo (figura 20), que van cambiando gradualmente de ceniza a marrón (Evans, 1981).
En laboratorio, M. roreri crece tanto en medios naturales como artificiales. También, este patógeno es capaz de colonizar órganos vegetativos, previamente esterilizados, lo que lleva a pensar en este método como una alternativa para la evaluación de resistencia de materiales (Merchán, 1981).
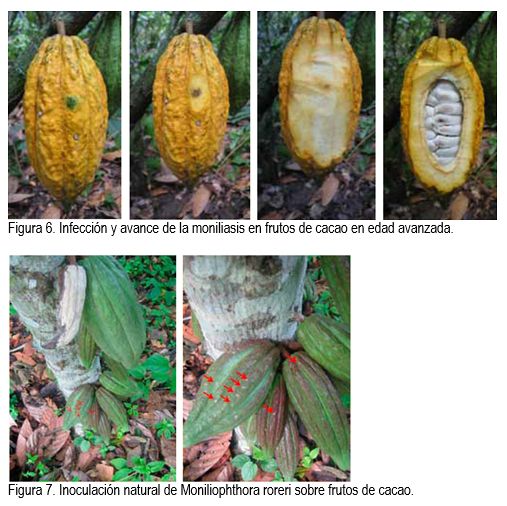
Figura 7. Inoculación natural de Moniliophthora roreri sobre frutos de cacao.
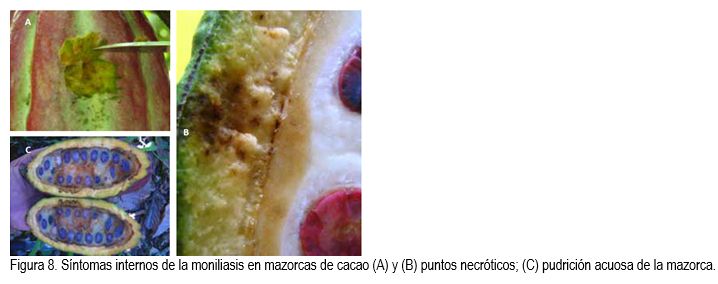
Los síntomas de la enfermedad pueden variar con la edad del fruto o tipo de material genético. Los tejidos internos de la mazorca pueden ser sustituidos por sustancias acuosas o gelatinosas (figura 21), razón por la cual esta enfermedad también es conocida y denominada de forma inadecuada como pudrición acuosa de los frutos. Con frecuencia, las almendras se presentan pegadas unas con otras de manera desorganizada, haciendo difícil su remoción.
Los frutos enfermos son normalmente más pesados que los frutos sanos. En algunos materiales o clones de cacao no se presenta esporulación sobre los frutos maduros infectados, lo cual no permite diferenciarlos de aquellos afectados por escoba de bruja (Evans, 1981; Lopes y Martins, 2005).
Epidemiología
La esporulación del hongo sobre la superficie del fruto es tan intensa que las nubes de esporas son liberadas y transportadas por el viento, la lluvia y en menor proporción por insectos (Evans, 1986). Se estima que las densidades de esporulación del hongo sobre un fruto pueden alcanzar los 44 millones de esporas por cm2 de área.
Una mazorca esporulada ubicada a una altura aproximada de dos metros tiene un gradiente de dispersión, con capacidad de infección de 40%, de hasta una distancia de 20 m (Merchán, 1981). Existe una correlación significativa y positiva entre la población de conidios en el aire y la temperatura, y negativa con respecto a la humedad relativa (Porras V., 1983).
En tanto que tal nivel de esporulación sólo se observa durante pocas semanas después de su inicio, reduciéndose la cantidad de esporas producidas hasta aproximadamente diez semanas, cuando se torna casi insignificante. Las esporas pueden ser aisladas de los mismos frutos momificados, incluso después de un año de la infección, lo que es garantía de la oferta de inóculo durante ese tiempo (Evans, 1981). Al menos 90% de las esporas pueden germinar sobre medios artificiales, pero sólo 10% lo puede hacer sobre agua (Ram et al., 2004).
Los frutos momificados y esporulados en la copa del árbol son considerados la principal fuente de inóculo para iniciar la epidemia, diseminando las esporas en sentido descendente (figura 20). La presencia de agua libre no sólo permite la germinación de las esporas, sino que remueve el inóculo desde estos frutos. Se ha encontrado que la eliminación y disposición de los frutos con síntoma de mancha sobre el suelo no sólo permite la descomposición por parte de los microorganismos presentes en éste, sino que dejan de ser importantes en la diseminación de M. roreri (Aranzazu 1987; Cubillos 1981).
En Colombia, normalmente los frutos infectados entre los periodos de noviembre– enero y marzo–julio esporulan después de marzo–abril y septiembre–octubre, respectivamente. Estos últimos coinciden con los periodos de cosecha. Existe una estrecha correlación entre la cantidad de lluvia, el periodo de floración y la formación de frutos con la ocurrencia de la enfermedad (Lopes y Martins, 2005). Se cree que la infección de los frutos ocurre durante la floración o durante la formación de los frutos, sin embargo las pruebas para comprobar este hecho son insuficientes.
Durante el año, una vez que se encuentran frutos enfermos o infectados, se cree que ocurren varias infecciones secundarias durante las épocas lluviosas. No es claro hasta qué punto pueden ser diseminadas las esporas a partir de las fuentes de inóculo, sin embargo ya se han sugerido distancias de hasta de 1 km (Evans, 1981; Lopes y Martins, 2005), mientras que otros autores más conservadores han limitado tal diseminación a distancias entre 30 y 375 m (Lopes y Martins, 2005).
En Colombia, el ciclo de la enfermedad de la moniliasis puede iniciar en cualquier época del año, debido a que la fuente de inóculo primario es de presencia constante, debido a la distribución de los ciclos de lluvia a lo largo del año, con una correlación
positiva entre la incidencia de la moniliasis y la lluvia ocurrida dos meses atrás (Merchán, 1981). Sin embargo, las épocas críticas se presentan entre noviembre– enero y marzo–julio (figura 22), cuando inicia la floración y los frutos se encuentran en estados de mayor susceptibilidad.
Rango de hospederos
Moniliophthora roreri ha sido reportado solamente en especies de los géneros Theobroma y Herrania. Rorer en 1918 reportó el ataque de frutos de T. bicolor y H. balaensis en Ecuador. Baker et al. (1954) reportaron infecciones en T. gireli. Además, Evans (1981) reportó infecciones de M. roreri en T. mammosum, T. simiarum, T. sylvestre, T. angustifolium, H. nítida, H. pulcherrima. Posteriormente, Enríquez y Soria (1981) identificaron el patógeno en T. grandiflora y H. purpurea (Cuhn, 2006).