La mazorca negra (Phytophthora sp.) origen
- Autor/a de la tecnología
- Yeirme Jaimes Suárez, Fabio Aranzazu Hernández
- Institución que la publica
- Corpoica, Fedecacao, IICA · Colombia
- Documento fuente
- MANEJO DE LAS ENFERMEDADES DEL CACAO (Theobroma cacao L) EN COLOMBIA, CON ÉNFASIS EN MONILIA (Moniliophthora roreri) · 26-27-28-29-30-31 pág.
- Código de ficha
- 900257
Descripción de la tecnología:
Origen de la enfermedad
Estudios moleculares indican que el centro de origen de este microorganismo se encuentra en África, y sugieren que la especialización de esta especie por el cacao se originó al momento de la introducción de las primeras plantas a este continente (Brasier y Hansen, 1992).
Distribución geográfica
El género Phytophthora se encuentra distribuido en todo el mundo; predominan diferentes especies de acuerdo con la zona geográfica y el hospedero. En cacao se han reportado siete especies patógenas: P. palmivora, P. megakarya, P. capsici, P. citrophthora, P. nicotianae var. Parasitica, P. megasperma y P. arecae. Las especies patógenas del género Phytophthora que afectan el cultivo de cacao se encuentran distribuidas geográficamente así:
- P. palmivora se encuentra ampliamente distribuida en las regiones tropicales con climas cálidos y de alta pluviosidad (Stamps, 1998).
- P. capsici se encuentra distribuida en Europa (Bulgaria, Francia, Italia, Grecia, España, Unión Soviética), Asia (China, India, Irán, Israel, Japón, Corea, Líbano, Malasia, Arabia Saudita, Turquía), América del Norte (Canadá, Estados Unidos y México), Centro y Suramérica y las Antillas (Stamps, 1998).
- P. megakarya se encuentra distribuida en el este y centro de África (Stamps, 1998).
- P. citrophthora se encuentra distribuida en África (Argelia, Angola, Congo, Egipto, Mauricio, Marruecos, Mozambique, Rodesia del Norte, Sudáfrica, Rodesia del Sur, Túnez); Asia (China, India, Irak, Israel, Japón, Malasia, Filipinas, Tailandia, Turquía); Australia (Australia, Islas Cook, Hawai, Nueva Celedonia, Nueva Zelanda); Europa (Chipre, Francia, Italia, España); América Central (Cuba, El Salvador, Jamaica, Puerto Rico); América del Norte (México, Estados Unidos); Suramérica (Argentina, Brasil, Chile, Perú, Surinam, Uruguay) (Stamps, 1998).
- P. nicotianae var. parasitica se encuentra distribuida en África (Etiopía, Malí, Madagascar, Mauricio, Marruecos, Nigeria, Sierra Leona, Rodesia del Sur, Tanganyika); Asia (Birmania, Ceilán, China, Formosa, India, Israel, Japón, Java, Malasia, Filipinas); Australia y Oceanía (Australia, Hawai, Tasmania); Europa (Chipre, Francia, Alemania, Gran Bretaña, Holanda, Irlanda, Italia, Polonia, Portugal, Unión Soviética); América del Norte (Bermuda, Canadá, México, Estados Unidos); Centro América y Antillas (Costa Rica, Cuba, El Salvador, Guatemala, Jamaica, Montserrat, Puerto Rico, Trinidad); Suramérica (Argentina, Brasil, Guyana Británica, Colombia, Paraguay, Perú, Venezuela) (Stamps, 1998).
- P. megasperma se ha reportado que afecta al cacao en Venezuela y Cuba.
- P. arecae se encuentra distribuida en Asia (India, Sri Lanka) (Stamps, 1998).
Etiología
La mazorca negra es causada por varias especies del género Phytophthora. Este género alberga varios agentes causales de enfermedades, en un amplio rango de plantas hospederas. Los microorganismos que integran este género se encuentran clasificados dentro del reino Stramenopila, filum Oomycota.
Durante la mayor parte de su ciclo de vida, las especies de Phytophthora tienen una fase haploide y la pared celular está compuesta por celulosa; esta característica las diferencia de los hongos, que en vez de celulosa contienen quitina. Otra característica diferencial entre Phytophthora sp. y los hongos es la motilidad, la cual juega un papel importante en los patrones de dispersión de la enfermedad.
La especie considerada más agresiva es P. megakarya, que causa pérdidas cercanas a 80% de la producción de grano en Nigeria, Camerún y parte de Ghana (Pokou et al., 2008). Según los patrones de avance del patógeno, se estima que en los próximos 10 a 15 años P. megakarya se habrá diseminado a todas las regiones productoras de Ghana y Costa de Marfil. Cuando esto ocurra, se pronostican pérdidas en la producción mundial de grano entre 20% y 40%, lo que ocasionaría un gran impacto negativo sobre la economía global del cacao (Tahi et al., 2006).
A pesar de la gran importancia de P. megakarya, en el ámbito mundial existen otras especies como agentes causales de la mazorca negra. La especie con mayor incidencia y más ampliamente diseminada en el mundo es P. palmivora responsable de 20% a 30% de pérdidas anuales de la producción mundial de grano y aproximadamente 10% de muerte de árboles (Guest, 2007). Otra especie del mismo género es P. parasítica, que incide tanto en el continente Africano como en Latinoamérica. Además, en Latinamérica existen otras especies de Phytophthora que causan la enfermedad de la mazorca negra, tales como P. citriphthora y P. capsici y otras especies sin identificar (Hebbar, 2007).
Las pérdidas generadas por especies de Phytophthora han sido ampliamente reportadas desde 1921. Actualmente, la mazorca negra es considerada como la enfermedad más común e incidente en el mundo, siendo los países productores del África los más afectados. De ahí su importancia, ya que estos países producen aproximadamente 72% del grano.
Taxonomía
Las especies causantes de la enfermedad mazorca negra del cacao pertenece al dominio Eukaryota, reino Chromalveolata, filum Heterokontophyta, clase Oomycetes, Orden Pythiales, familia Pythiaceae, género Phytophthora.
Las especies del género Phytophthora y pertenecientes a la clase Oomycetes difieren de los hongos en características especiales, tales como el contenido de celulosa en la pared celular; la fase vegetativa diploide, el flagelo heteroconte, y las cristas mitocondriales tubulares. Aún más, los Oomycetes poseen rutas metabólicas únicas que los diferencian de sus homólogos los hongos superiores (Griffith et al 1992).
Morfología
Las especies que afectan al cultivo comercial difieren en su morfología, lo cual es una característica que permite hacer su diferenciación. A continuación se describe brevemente la morfología de cada especie:
- P. palmivora: las hifas de esta especie son completamente uniformes, pocas veces sobrepasan los 5 μm de diámetro. A menudo, esta especie produce clamidiosporas con diámetro entre 30 - 35 μm en abundancia y en las primeras fases de desarrollo. Los esporangioforos son estrechos, simpoidales simples y con paredes muy bien definidas. Los esporangios se forman fácilmente sobre medio de cultivo, estos son elipsoides u ovoides con un tamaño de 35 – 60 μm x 20 – 40 μm y puede llegar hasta 90 x 45 μm. No se encuentran normalmente oogonios en cultivos puros, pero abundan cuando son aislados de compatibilidad opuesta (A1 y A2) y se aparean. Presenta anteridios anfígenos, esféricas u ovales con un tamaño de 14 x 15 μm. Las oosporas casi llenan el oogonio, tienen una pared de 2 μm. Los cultivos in vitro son uniformes, ligeramente radiados con escaso micelio aéreo. La temperatura de crecimiento mínima es de 11° C, la óptima está entre 27° y 32° C, y la máxima es de 35° C o menos (Stamps, 1998).
- P. capsici: las hifas de esta especie son uniformemente gruesas con 5 – 7 μm de ancho. Tiene esporangios estrechos, algunas veces son ligeramente anchos en la base del esporangio y ramificados irregularmente. Las clamidiosporas son raras o ausentes. Los esporangios son a menudo irregulares, casi esféricos, ovoides o alargados, que pueden medir 30-100 x 25-35 μm, a menudo distorsionados y con más de un apéndice, papila, pedicelo de 10 μm o más de largo. El oogonio se puede encontrar en cultivos puros de algunos aislados con 30 μm de diámetro (máximo 39) y una pared de color pardo amarillento. Tiene anteridio anfígeno de 15 x 17 μm. Las oosporas casi llenan el oogonio, éstas son de pared delgada. Los cultivos in vitro son finamente radiados, con temperaturas de crecimiento: mínima de 10° C, óptima de 28° C y máxima de 37° C (Stamps, 1998).
- P. megakarya: las hifas de esta especie son completamente uniformes con un diámetro de 2,5 – 5 μm. Los esporangioforos tienen desarrollo simpoidal y sólo se producen sobre medio de cultivo in vitro, ovoide (20 – 60 x 13 – 41 μm), pedicelado (10 – 30 μm), estrecho, no ocluido y con papila prominente. Los oogonios se forman en cultivos de tipos A1 y A2 compatibles y con tamaño de 19 – 37 μm de diámetro. Los cultivos in vitro se caracterizan por el micelio aéreo abundante y bordes de la colonia difusos. Las temperaturas de crecimiento son: mínima de 10° – 11° C, óptima de 24° – 26° C y máxima de 29° – 30° C (Stamps, 1998).
- P. citrophthora: las hifas de esta especie son de hasta 6 ó 7 μm de ancho. Tiene esporangioforos de 1 – 2 μm de ancho, con pequeña ampliación en la base, ramificaciones irregulares con una ligera hinchazón en las bifurcaciones. Los esporangios son más bien escasos en medios de cultivo, en agua son muy variables en su tamaño y forma, a menudo con dos vértices muy divergentes con medidas de 40 – 45 x 27 μm ó 50 – 55 x 30 μm, y pueden llegar a tener hasta 90 x 60 μm, las papilas son casi hemiesféricas. Esta especie puede no presentar clamidiosporas o son escasas con 28 μm de diámetro y con un grosor de pared de 1,5 – 2 μm.
No se le conoce oogonio ni anteridio. Los cultivos in vitro tienen una apariencia finamente radiada, en algunas ocasiones similar a una llama. Las temperaturas de crecimiento son: mínima de 5° C, óptima de 24° – 28° C y máxima de 32° C (Stamps, 1998).
- P. nicotiana var. Parasitica: las hifas de esta especie son gruesas, de hasta 9 μm de ancho, irregulares en anchura pero sin la hinchazón típica en la base de la hifa. Los esporangióforos son más delgados que las hifas, ramificados irregularmente y simpoidales. Tiene esporangios ampliamente ovoides a esféricos, sin reducción notable del apéndice con un tamaño de 30 x 38 μm (máximo 40 x 50 μm). La especie tiene clamidiosporas de hasta 60 μm de ancho, de formación tardía (entre 1 y 2 semana) con un grosor de pared de 3 – 4 μm y con la edad se tornan de color pardo amarillento. El oogonio se produce en cultivo puro tras varias semanas de crecimiento con un tamaño de 24 – 31 μm; con la edad la pared de estas estructuras se torna parda amarillenta. El anteridio es esférico u oval con 10 – 16 μm de diámetro. Tiene esporas apleróticas de 18 – 20 μm con una pared gruesa de 2 μm. Los cultivos in vitro son variables, pero normalmente son irregulares, suaves con un patrón irregular de roseta. Las temperaturas de crecimiento son: mínima de 10° C, óptima de 30° – 32° C y máxima de 37° C o más (Stamps, 1998).
- P. megasperma: las hifas de esta especie tienen 3 μm de ancho; raras veces las hifas presentan hinchazones en medio de cultivo, pero aparecen con gran frecuencia en soluciones acuosas como inflamaciones esferoidales o elipsoidales. Los esporangióforos son delgados entre 2 – 2,5 μm de ancho y pueden llegar a ser de hasta 5 μm en la base del esporangio. Los esporangios no se producen
sobre medio de cultivo, pero son regularmente ovoides, usualmente de 35 – 50 μm x 2 – 35 μm; no presentan papila, pero sí, un engrosamiento apical ligero. Los órganos de reproducción sexual abundan en medio de cultivo. Los oogonios son esféricos con diámetro de 40 – 50 μm en promedio, con paredes hialinas o ligeramente amarillentas, lisas de hasta 1,5 μm de espesor. Las oosporas son apleróticas.
Ciclo de vida
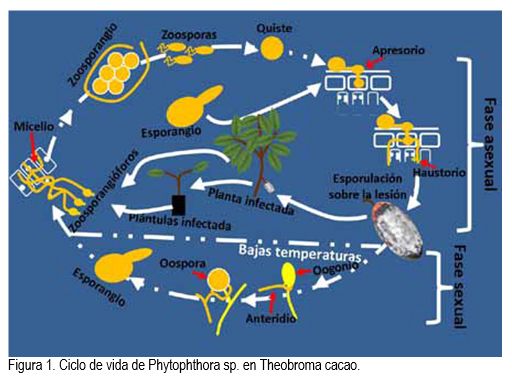
El ciclo de vida de Phytophthora sp. involucra tanto el estado asexual como el sexual, que se presentan dependiendo de las condiciones ambientales. Predomina el estado asexual, el cual inicia cuando la estructura vegetativa o esporangio germina, y en condiciones óptimas de humedad (agua libre) y temperatura (15°– 38° C) libera las zoosporas (figura 1). Éstas son estructuras (esporas) móviles, de vida corta y poseen dos flagelos, uno anterior y otro posterior. El anterior es el responsable de movilizar la zoospora a través del agua (hasta 1,5 cm), mientras que el flagelo posterior actúa como una hélice que le da la dirección a la célula (Judelson y Blanco, 2005; Walker y Van West, 2007). Las zoosporas cumplen dos papeles fundamentales para el ciclo de vida del patógeno: 1) transmisión del patógeno de un hospedero a otro y 2) dar la orientación del patógeno hacia el sitio de infección (hospedero) (Walker y Van West, 2007).
Sintomatología
Pudrición de la mazorca
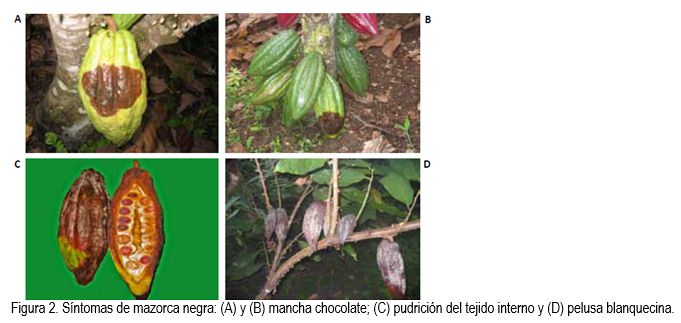
La mazorca negra, causada por especies de Phytophthora, inicia sobre la superficie de la mazorca con una mancha descolorida, sobre la que posteriormente se desarrolla una lesión chocolate o negra con límites bien definidos (figura 2 A y B). En dos semanas, ésta se empieza a dispersar hasta alcanzar toda la superficie de la mazorca. Sobre mazorcas mayores a tres meses de edad, las infecciones inician principalmente en la punta (figura 2B) o al final del pedúnculo que une a la mazorca (McMahon y Purwantara, 2004). Los granos o almendras de las mazorcas enfermas permanecen sin daño por varios días, después de iniciar la infección en la cáscara. Esto significa que la cosecha frecuente puede prevenir muchas pérdidas de la producción. Las infecciones ecuatoriales están usualmente asociadas con el daño por heridas de la superficie de la mazorca; en ella se involucra la pudrición total del tejido carnoso como también la pulpa y las semillas (figura 2C) (McMahon y Purwantara, 2004). Los frutos cercanos a la madurez fisiológica, con semillas no muy grandes y sin contacto cercano con la cáscara no presentan infección de semillas y pueden ser cosechados y fermentados.
El patógeno aparece sobre la superficie de la mazorca como una pelusa blanquecina (figura 2D), sobre la que se forma la masa de esporangios. La mazorca finalmente se ennegrece y marchita, y es colonizada por hongos secundarios. P. palmivora puede causar marchitez en mazorcas inmaduras o cerezas, pero es necesario distinguirla de la marchitez fisiológica relacionada con estrés por un excesivo número de frutos en el árbol (McMahon y Purwantara, 2004).