
Escoba de bruja (Moniliophthora perniciosa (Stahel) Aime y Phillips-Mora)
- Autor/a de la tecnología
- Yeirme Jaimes Suárez, Fabio Aranzazu Hernández
- Institución que la publica
- Corpoica, Fedecacao, IICA · Colombia
- Documento fuente
- MANEJO DE LAS ENFERMEDADES DEL CACAO (Theobroma cacao L) EN COLOMBIA, CON ÉNFASIS EN MONILIA (Moniliophthora roreri) · 36-37-38-39-40-41 pág.
- Código de ficha
- 900254
Origen de la enfermedad
Moniliophthora perniciosa es endémico de las especies nativas del género Theobroma en los sistemas de los ríos Amazonas y Orinoco (Holliday, 1998).
Distribución geográfica
El agente causal de la escoba de bruja, Moniliophthora perniciosa, se encuentra confinado a las zonas productoras de cacao en Suramérica, Trinidad y Tobago, y Granada (Holliday, 1998).
Etiología
Moniliphthora perniciosa (Stahel) Aime y Phillips-Mora es el agente causal de una de las tres principales enfermedades del cultivo de cacao en Latinoamérica, denominada escoba. Este hongo fue inicialmente descrito como Marasmius perniciosus Stahel, pero en 1942 Singer lo reclasificó en el género Crinipellis, especie C. perniciosa (Stahel) Singer. Éste se conoció bajo el nombre de C. perniciosa hasta el 2005, cuando Aime y Phillips-Mora (2005) demostraron, mediante el uso de la secuenciación de ADN, que este hongo se encuentra muy relacionado con Moniliophthora roreri, agente causal de la moniliasis. Estas dos especies forman actualmente un linaje separado de Marasmiaceae que incluye varios miembros de Crinipellis sección Iopodinae, la cual compromete formalmente individuos con pigmentación rosa/púrpura de los miembros del género Crinipellis (Meinhardt et al., 2008).
Se cree que Moniliophthora perniciosa tiene su origen y ha coevolucionado con plantas hospederas en la cuenca alta del río Amazonas, del lado este de los Andes (Purdy y Schmidt, 1996). Este es patógeno de cinco familias de dicotiledóneas, incluyendo miembros de las familias Malvaceae, Solanaceae, Bignoniaceae, Bixacea y Malpighiaceae (Evans, 1980; Purdy y Schmidt, 1996; Griffith et al., 2003; Do Rio et al., 2008).
Taxonomía
Moniliophthora perniciosa es un organismo del dominio Eukaryota, reino Fungi, filum Basidiomycota, clase Basidiomycetes, subclase Agaricomycetidae, orden Agaricales, familia Tricholomataceae, género Moniliophthora y especie M. perniciosa.
Morfología
M. perniciosa presenta:
- Píleos color carmesí, generalmente débiles, que se tornan pálidos con la edad y presentan una mancha en el centro de color rojo a negro. Estos se encuentran dispuestos de forma radial y del mismo color, acanalados y acampanados, los cuales se expanden con una margen cóncava o convexa aplanada con un centro deprimido. Los píleos presentan diámetro que va desde 2 hasta 25 mm, su promedio está entre 5 y 15 mm (Holliday, 1998).
- Subpileopellis: de pared gruesa, con hifas no amilodes, con escasez de pelos, numerosos en el centro, con una pared roja cuando son frescos, los cuales se tornan hialinos con la edad y en la medida que se secan. Estas estructuras tienen un tamaño de 80-150 x 4-12 μm (Holliday, 1998).
- Lamelas blanquecinas, muy gruesas (0,2 mm), medianamente gruesas o muy anchas (1-2 mm), distantes (8 – 20 lamelas), con ranuras que corresponden a los pileus (Holliday, 1998).
- Cheilocistidias muy regulares, en forma de botella con un tamaño de 35-50 x 9-14 μm.
- Pleurocistidias ausente.
- Estipe blanco, excepto en la base sub-bulbosa engrosada, la cual es ligeramente verde o amarilla. El estipe mide entre 5-10 mm de largo x 0,5–0,7 mm de ancho y la base mide 0,7 x 1,1 mm (Holliday, 1998).
- Hifas con conexiones de gancho (Holliday, 1998).
- Basidios con un tamaño de 31–32 μm de largo x 7–9 μm de ancho con 4 esporas (Holliday, 1998).
- Basidiosporas hialinas con un tamaño de 7–11 μm de largo x 4-5 μm de ancho (Holliday, 1998).
Ciclo de vida
M. perniciosa tiene un ciclo de vida paralelo con los síntomas de la enfermedad en la planta (figura 1). El ciclo inicia con las basidiosporas, consideradas como los únicos
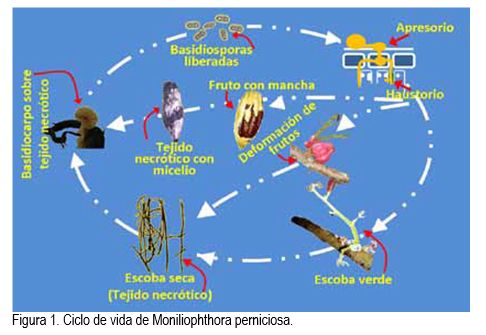
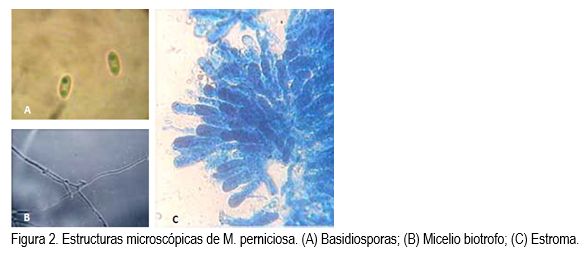
propágulos del hongo capaces de infectar los tejidos meristemáticos de cacao (Evans, 1980; Scarpari et al., 2005). Las basidiosporas son estructuras hialinas, ovales, con un tamaño de 12 μm x 6 μm (figura 2 A). A partir de ellas se forma el micelio biotrófico
monocariótico (figura 2 B), sin conexiones de gancho. Este micelio infecta los cojines florales, los frutos en desarrollo y los brotes vegetativos (Evans, 1980; Evans y Bastos, 1980; Do Rio et al., 2008).
Avanzada la infección, M. perniciosa causa hipertrofia, hiperplasia y la pérdida de dominancia apical de los tejidos, con proliferación de los brotes auxiliares y la formación de tallos anormales; estas estructuras son similares a una escoba, de ahí su denominación (Meinhart et al., 2008).
Sintomatología
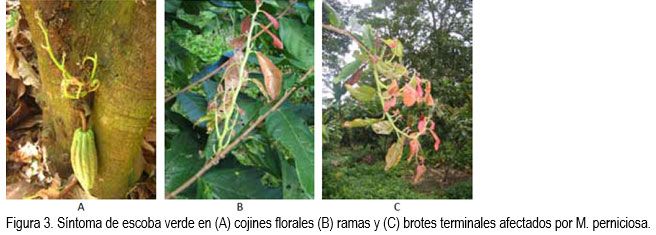
La sintomatología de la escoba de bruja es bastante variada; ha sido descrita en detalle por Holliday (1952), Baker y Holliday (1957), Evans (1981) y Rugard y Butler (1987). Cuando el hongo infecta ramas y brotes vegetativos, provoca hinchazón en la parte
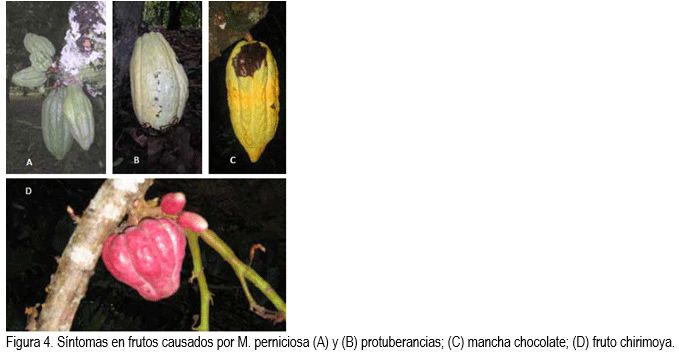
afectada, acompañada de la proliferación de pequeños brotamientos próximos a los otros, donde se forman las hojas con apariencia de una escoba de bruja (figura 3 C). La infección de los cojines florales se manifiesta con la formación de escobas, con la presencia o no de pequeños frutos partenocárpicos (frutos chirimoya) (figuras 3 A y 4 D). También, M. perniciosa causa la pudrición de los frutos de cacao (figura 4), los cuales son susceptibles durante todo su desarrollo.
Cuando el patógeno infecta los frutos durante las primeras semanas de edad, se detiene su crecimiento causando la muerte o marchitez prematura. En frutos enfermos de 1 a 4 meses de edad, se presentan deformaciones, hinchazón (figura 4 A y B) y se forma un área necrótica (figura 4 C) más oscura que la ocasionada por la pudrición por monilia, la cual termina en una pudrición acuosa y en la pérdida total de las semillas. En infecciones tardías, es decir, en frutos mayores de 4 meses, la infección causa una pérdida parcial de las semillas de cacao (Meinhardt et al., 2008). Extraordinariamente, después de estos síntomas, la hifa biotrófica de M. perniciosa se encuentra en bajas densidades y no produce haustorio; sólo se limita a ocupar el espacio apoplástico y presenta un crecimiento lento. Se ha demostrado que el micelio biotrófico se puede mantener viable en condiciones in vitro, si se ponen a crecer las esporas en un medio carente de nutrientes, pero con glicerol como única fuente de carbono.
A partir de estas observaciones, se cree que la baja concentración de nutrientes en el apoplasto puede ser la clave para la fase biotrófica de este patógeno (Do Rio etal., 2008). Más aún, durante esta fase, parece ser que el tejido infectado se somete a un intenso estrés oxidativo, que se evidencia por un incremento de la peroxidación de lípidos (Scarpari et al., 2005; Do Rio et al., 2008). Este evento oxidativo se debe a la producción de peróxido de hidrógeno por la degradación enzimática de cristales de oxalato de calcio, los cuales se han producido y almacenado durante el progreso de la
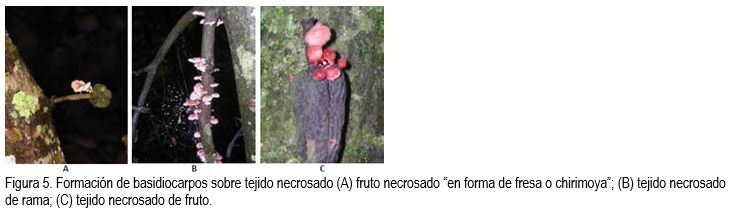
enfermedad y están presentes en el tejido infectado (Do Rio et al., 2008). Después de 1 ó 2 meses de presentarse las alteraciones, los tejidos enfermos se necrosan y mueren, dando lugar a la formación de una estructura denominada escoba seca (figura 5 B) (Meinhart et al., 2008). En esta fase necrótica, el hongo adquiere unas características distintivas, tales como: un micelio dicariótico saprofítico/ necrótico, en el cual se observan las conexiones de gancho. A diferencia de la fase biotrófica, el micelio saprofítico (diámetro de 1 – 3 μm) crece vigorosamente, colonizando rápidamente el material vegetal infectado. Durante esta fase, después de alternar periodos húmedos y secos, tiene lugar la formación de los basidiocarpos sobre el tejido vegetal necrosado (figura 5) (Rocha y Wheeler, 1985; Almeida et al., 1997; Scarpari et al., 2005). Esta fase tiene una duración aproximada entre 17 a 25 semanas (Holliday, 1952; Meirelles, 2002).
Durante la fase saprofítica, el hongo sobrevive en un estado dormante sobre lasescobas secas o frutos momificados hasta el inicio de la época de lluvias (Evans y Bastos, 1979; Meirelles, 2002).
La condición ambiental requerida para la liberación de las basidiosporas es la humedad relativa próxima a la saturación (es decir cercana al 100%), la oscuridad y las temperaturas entre 20° a 30° C (Rocha y Wheeler, 1985). La liberación nocturna
garantiza la supervivencia de estos propágulos por más tiempo.
En condiciones de campo, en Trinidad y en Ecuador, la mayor liberación de basidiosporas ocurre entre 10 p.m. y 4 a.m., con una humedad relativa mayor al 95% y temperaturas entre 20° a 24° C (Evans y Solórzano, 1982). Una vez liberadas, las basidiosporas tienen un periodo de viabilidad corto, debido a su sensibilidad a la luz y al secamiento (Evans, 1980; Flood y Murphy, 2004).
La dispersión natural de las basidiosporas se da principalmente por el viento y la lluvia, a partir de fuentes de inóculo como escobas necrosadas y frutos enfermos. La infección tiene lugar cuando las esporas son depositadas sobre las yemas vegetativas, cojines florales o frutos en desarrollo. La infección de yemas dormantes se convierte en infecciones latentes, ya que forman pequeños puntos necróticos que se activan cuando inicia el periodo de brotación (Bastos, 1994; Meirelles, 2002).
Sin duda alguna, el principal mecanismo de dispersión del patógeno es el hombre, por el transporte de material vegetal de un lugar a otro. Por tal motivo, en Panamá se ha mantenido un cordón fitosanitario, con el fin de evitar el avance de la escoba de bruja a Centroamérica. La variación genética de M. perniciosa es evidente, dada por la adaptación de este patógeno a otras especies vegetales. Se han definido cuatro biotipos de M.
perniciosa, a saber: el biotipo S que afecta a solanáceas, el biotipo B que afecta a Bixa orellana (familia Bixaceae) o achiote, el biotipo L que afecta a Arrabidaea verrucosa (familia Bignoniaceae) y el biotipo C que afecta a especies del género Theobroma. Los
biotipos B, C y S son homotálicos, lo cual indica la alta variabilidad genética de sus poblaciones (Purdy y Schmidt, 1996).
De acuerdo con lo anterior, la posible formación de heterocariones puede ocurrir sobre los tejidos infectados aún verdes, mediante basidiosporas diferentes genéticamente antes del desarrollo del micelio binucleado necrótico, en las escobas secas. Griffith (1989) reportó la presencia de numerosos grupos de compatibilidad somática (GCS) entre los aislados del biotipo C de la provincia de Napo (Ecuador), en contraste con los de la costa de Ecuador donde sólo se identificó un GCS.
Epidemiología
El patosistema Cacao - M. perniciosa es dependiente y limitado por la humedad atmosférica (lluvia, niebla, rocío y humedad relativa). La presencia o ausencia de
cualquiera de las condiciones ambientales afecta la fenología del hospedero, la producción de basidiocarpos, la liberación de basidiosporas, la dispersión, infección y la sincronía entre estos eventos.
La temperatura regula la tasa de desarrollo de la enfermedad, pero rara vez es un factor limitante de su desarrollo; ésta juega un papel importante en: (1) el secado de las
escobas, por ende promueve la producción de basidiocarpos; (2) la evapotranspiración, la cual induce estrés por humedad y asfixia de los tejidos del hospedero, por ende incrementa el número y sincronía de los sitios de infección; y (3) la formación de rocío sobre hospederos susceptibles proveen la humedad requerida para la germinación de las basidiosporas y la subsecuente infección (Purdy y Schmidt, 1996).
Los basidiocarpos se forman sobre tejido necrótico del dosel y tronco del cacao. La fuente más importante de estas estructuras son las escobas vegetativas necróticas en el dosel del árbol, escobas podadas o caídas descubiertas por el lecho o mulch sobrem el suelo, escobas sobre cojines florales y mazorcas enfermas en el árbol o el suelo. Mientras que las escobas del dosel son la fuente más importante de basidiocarpos, otras fuentes pueden tener significancia epidemiológica dependiendo de la edad del árbol, los factores climáticos y las prácticas fitosanitarias (Purdy y Scmidt, 1996).
Los basidiocarpos son producidos por M. perniciosa en respuesta tanto a la humedad como a la sequía. Durante periodos secos prolongados los basidiocarpos son pocos, mientras que en periodos con amplia presencia de lluvias, se presentan durante todo el año. En campo, los basidiocarpos aparecen sobre las escobas a las 4-8 semanas de lluvia continua, pero también pueden aparecer antes dependiendo de la edad, la localización de la escoba y el clima (Purdy y Schmidt, 1996).
Las escobas vegetativas pueden producir docenas o cientos de basidiocarpos, y cada uno de ellos puede producir desde cientos a miles de basidiosporas durante su periodo de viabilidad, las que dispersa el viento y la lluvia. Las basidiosporas son liberadas en abundancia entre las 8 p.m. y 7 a.m., cuando la humedad es alta y la temperatura baja. La temperatura óptima para la liberación de las esporas es de 20° a 25° C, pero los basidiocarpos liberan esporas entre 10° y 30° C entre 2 y 8 días. Cuando las escobas son abundantes, el inóculo no es un factor limitante de la epidemia, excepto durante periodos secos prolongados (Purdy y Schmidt, 1996).