
Cáncer en el tallo del árbol de cacao
- Autor/a de la tecnología
- Yeirme Jaimes Suárez, Fabio Aranzazu Hernández
- Institución que la publica
- Corpoica, Fedecacao, IICA · Colombia
- Documento fuente
- MANEJO DE LAS ENFERMEDADES DEL CACAO (Theobroma cacao L) EN COLOMBIA, CON ÉNFASIS EN MONILIA (Moniliophthora roreri) · 32-33-34-35 pág.
- Código de ficha
- 900253
Descripción de la tecnología:
Cánceres
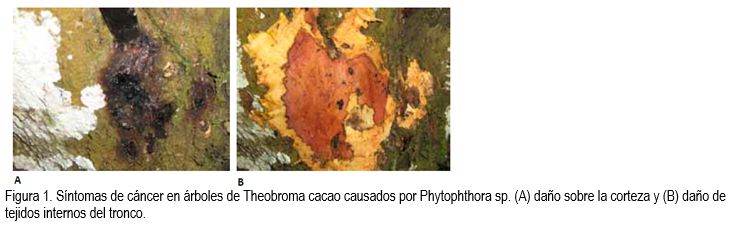
El cáncer en el tallo se caracteriza por el desarrollo de un área necrótica marrón en la corteza (figura 1A), alrededor del tronco. Cuando se raspa la superficie de la corteza afectada, el tejido expuesto se torna de acuoso a pegajoso y de un color opaco gris parduzco a un color rojizo claro (figura 1B). La necrosis no se extiende más allá de la capa del cadmium. En el caso de un cáncer grande, éste puede rodear en círculo el tronco, causando la muerte súbita del árbol (McMahon y Purwantara, 2004). Además, el uso de herramientas contaminadas en la poda se convierte en el vehículo de transmisión de la enfermedad a nuevos brotes. Los cánceres en cojines florales resultan de la contaminación con cuchillos de cosecha o por la visita de insectos vectores (McMahon y Purwantara, 2004).
El patógeno ataca naturalmente tanto hojas muertas endurecidas como tejidos de tallos verdes jóvenes. A menudo Phytophthora sp. también afecta hojas maduras, aunque esto no se suele considerar como un problema serio. Las infecciones de las hojas y tallos influorescentes puede conducir a la muerte del punto de crecimiento o de toda la planta en el caso de plántulas, ocasionando cánceres en la corteza cuando el patógeno se dispersa hacia un chupón. Dado que las plántulas de cacao crecen muy rápido durante los primeros meses, las hojas jóvenes son muy susceptibles al ataque del patógeno (McMahon y Purwantara, 2004).
Los vehículos de dispersión de la enfermedad son: la salpicadura de la lluvia, que aprovecha el inóculo presente en el suelo para afectar a las mazorcas más cercanas; la escorrentía, que transporta en la corriente del agua las zoosporas y permite la dispersión del patógeno hasta 2 metros y también el viento moviliza las zoosporas atrapadas en microgotas de agua, las cuales pueden ser transportadas hasta 12 metros de distancia (Efombagn et al., 2004).
Después de su liberación, las zoosporas responden a estímulos generados por el hospedero y a los 20 y 30 minutos se enquistan en el material vegetal. El proceso de infección inicia después de esta etapa, la zoospora pierde los flagelos y germina. La germinación se da como respuesta a las señales generadas por la planta, que dependen de los iones de Ca2+, dando lugar a la formación de la hifa infectiva, la cual penetra directamente al tejido e invade los espacios intercelulares. Existen evidencias de que la penetración tiene lugar a través de los estomas (Iwaro et al., 1999). En condiciones ambientales favorables, esta etapa tiene una duración aproximada de 48 horas (Attard et al., 2008). El desarrollo de la enfermedad está determinado por varios factores que tienen que ver con las características morfogenéticas, las cargas iónicas de la planta, los factores ambientales, también la frecuencia y tamaño de los estomas, ya que se cree que el patógeno penetra a través de éstos (Iwaro et al., 1999). La duración del ciclo de fructificación de cada material puede contribuir o no a la susceptibilidad (Berry y Cilas, 1994; Efombagn et al., 2004). Otra característica de gran importancia es la edad del fruto, siendo más susceptibles a mayor edad.
Durante la infección del fruto de cacao, la concentración de azúcares en los tejidos disminuye, sobre todo en clones altamente susceptibles. Esta disminución se encuentra relacionada con la rápida evolución del área necrótica en el tejido, donde Phytophthora sp. presenta un alto consumo de los azúcares simples y dobles, predominando en la pared celular la glucosa, fructosa y sacarosa. Por lo tanto, Phytophthora sp. no le permite a la planta hospedera la síntesis de componentes relacionados con la patogénesis, similares a los fenoles.
De igual manera, durante el proceso de infección se presenta una disminución de aminoácidos, esto se debe a que durante la interacción patógeno-planta hospedera, se activa la ruta del fenilpropanoide (Omokolo et al., 2002) y al final, se colapsan los tejidos vegetales. En este tiempo de avance de la enfermedad, aparecen los síntomas sobre las mazorcas, que en genotipos susceptibles aparecen en cualquier parte del fruto y se manifiestan como pequeñas manchas oscuras que crecen rápidamente, entre una a dos semanas, hasta cubrir la superficie total del fruto.
De manera ocasional los tejidos, incluidos los granos, se marchitan para dar lugar a las mazorcas momificadas, las cuales son un reservorio del inóculo y pueden proveerlo, al menos durante los tres años siguientes (Dennis y Konam, 1994; Flood y Murphy, 2004).
En condiciones de humedad, se pueden producir alrededor de 4 millones de esporangios sobre una mazorca. Estos son diseminados por el viento, la lluvia, los insectos, los restos vegetales de la cosecha, las herramientas contaminadas de la poda y el suelo; de esta forma se inicia un nuevo ciclo de la enfermedad (Flood y Murphy, 2004).
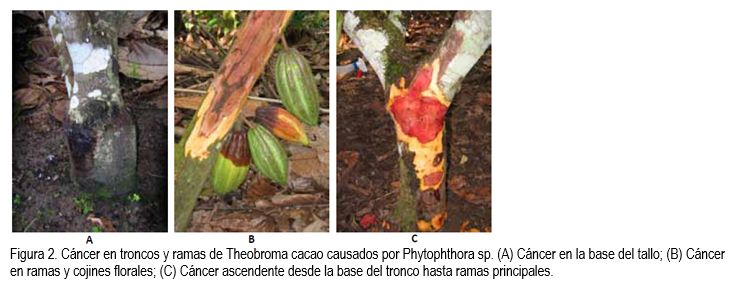
P. palmivora y P. Megakarya infectan chupones y troncos causando cáncer (figuras 2 y 3). Cuando el cáncer se encuentra sobre la base del tronco (figura 2 A), la infección llega hasta las raíces. A menudo no se puede observar el patógeno por el color del tronco (figura 2 C), sólo se puede identificar por la producción de un exudado color rojizo (figura 2 A). Se afectan cojines y flores a partir de los frutos enfermos, y los tejidos afectados mueren (figura 3). En contraste con la atención dada a la enfermedad de la mazorca negra, el cáncer causado por las especies de Phytophthora ha sido subestimado durante los últimos
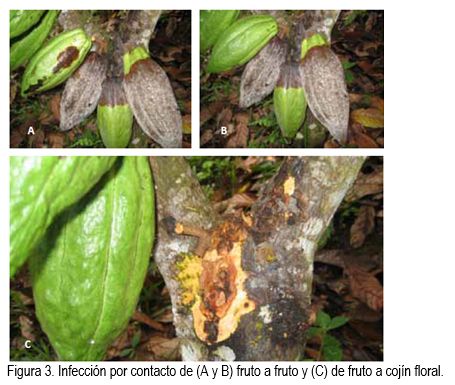
años. Es importante destacar que esta afección reduce el vigor y la productividad del árbol. Los cánceres están asociados frecuentemente con la presencia de barrenadores de tallo y corteza. Las especies de Phytophthora causan la muerte súbita de hasta 10% de los árboles cada año, reducción y pérdidas de la producción e impone un costo extra por las resiembras (Flood y Murphy, 2004).
La fase sexual de Phytophthora sp., es bastante escasa en condiciones naturales, debido a que las especies fitopatógenas de ésta en cacao son heterotálicas. Por este motivo, se requiere de un anteridio y un oogonio de hifas compatibles, pero de diferente grupo o cepas, para dar lugar a la formación de las oosporas. Las oosporas son importantes por su capacidad de sobrevivir en el suelo o en restos de tejido vegetal durante muchos años, ya que resisten a condiciones ambientales adversas tales como el frío, la degradación microbiana o los fungicidas químicos.
En otros patosistemas localizados en áreas donde se presentan las cuatro estaciones climáticas, las oosporas germinan al inicio de la primavera, así éstas estructuras en reposo representan el inóculo primario para el inicio de nuevas epidemias. La importancia que tiene la fase sexual es la generación de nuevos genotipos recombinantes, que pueden resultar en cepas o individuos más agresivos o resistentes a los fungicidas químicos (Prakob y Judelson, 2007).
La variabilidad en las poblaciones del patógeno está determinada por la frecuencia o número de veces que se lleva a cabo la fase sexual, esto hace más difícil el control de las especies de Phytophthora. Además, las oosporas también son estructuras o propágulos de resistencia que le permiten a este patógeno sobrevivir por largo tiempo, en condiciones ambientales adversas, con lo cual se dificulta, aún más, su erradicación (Kellman y Zentmyer, 1986).